В открытой статье мы договорились о простом: лактат бывает разным.
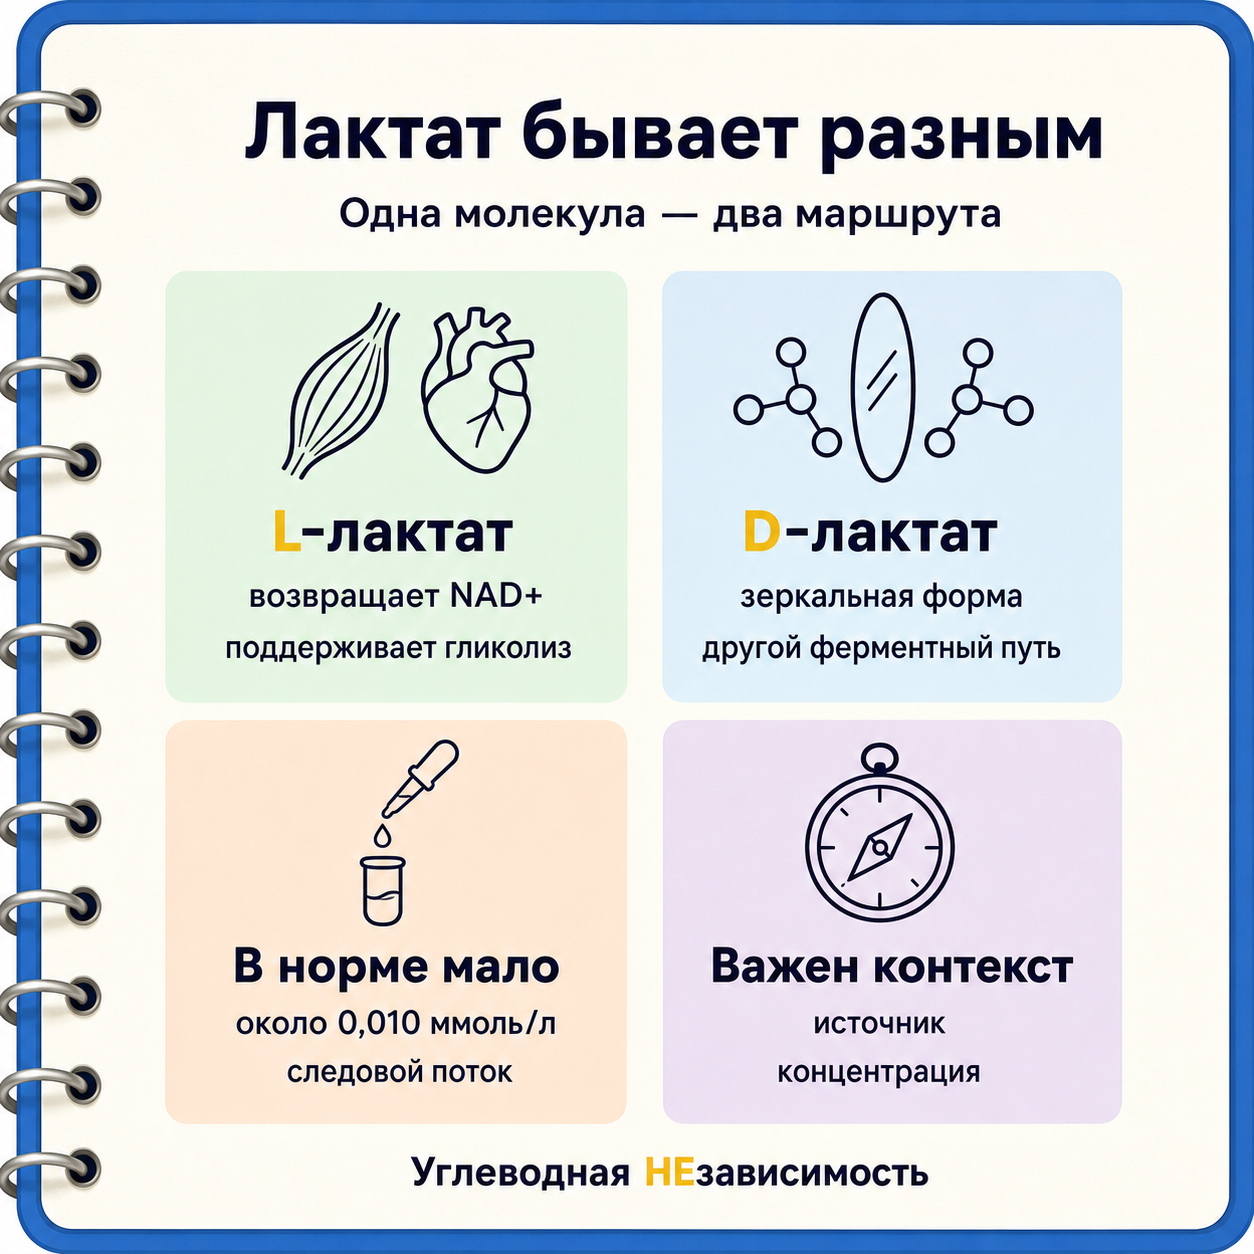
L-лактат — рабочая форма. Она помогает вернуть NAD+ (никотинамидадениндинуклеотид) и держать быстрый поток энергии. D-лактат — зеркальная форма. Организм обходится с ней иначе, а в норме держит на следовом уровне.
Теперь идём глубже.
D-лактат интересен не тем, что это «ещё один токсин». Такая рамка слишком грубая. Он интересен тем, что стоит на пересечении четырёх систем:
— гликолиза и его перегрузки; — метилглиоксаля и гликирования; — глутатиона и глиоксалазной защиты; — митохондрий и осторожной модели передачи электронов.
Если собрать эти части вместе, D-лактат перестаёт быть странной кишечной редкостью. Он становится подсказкой: там, где он появляется, клетка пыталась обойти перегрузку.
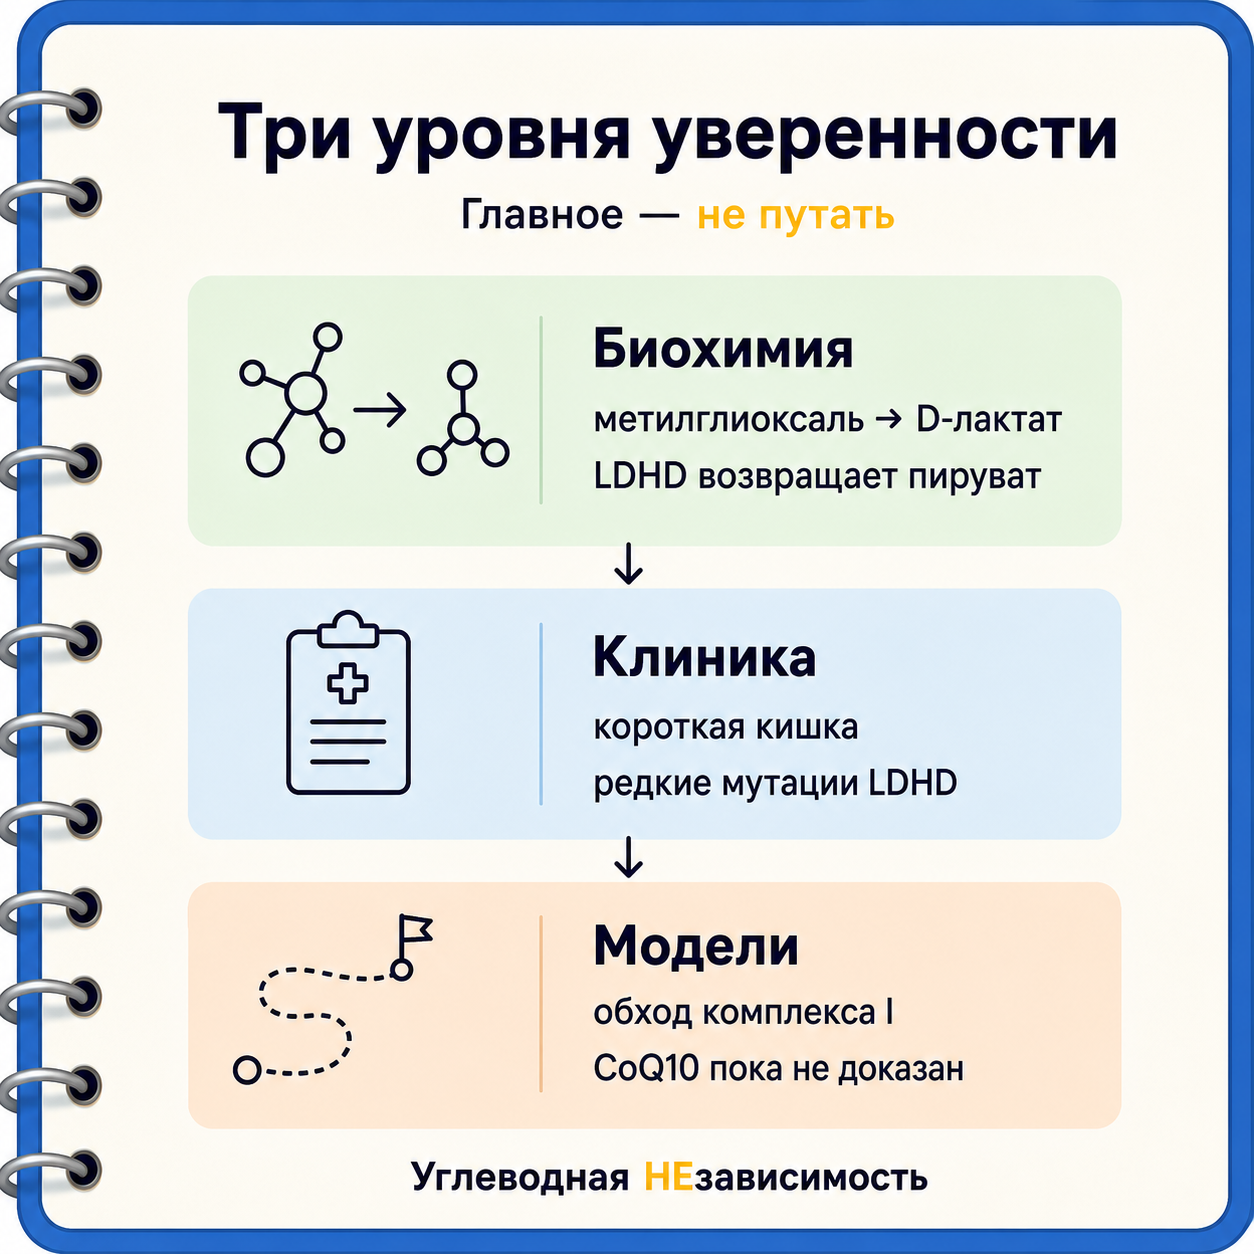
И сразу договоримся о честности. Тема держится на трёх разных уровнях уверенности. Есть твёрдая биохимия. Есть клинические факты. И есть красивые гипотезы, которые пока остаются гипотезами. Мы пройдём их именно в таком порядке — и не будем смешивать.
Это и есть главная ценность глубокого разбора. Не «ещё один страшный метаболит», а карта, по которой можно думать точнее.
Часть 1. Твёрдая биохимия
Здесь почти всё измерено и воспроизведено. Это фундамент, на котором стоит вся тема.
1. Зеркальные формы и почему ферменты их различают
L- и D-лактат — энантиомеры. Проще говоря, зеркальные формы одной молекулы. Атомы те же, связи те же, но пространственная ориентация разная. Как правая и левая перчатка.
Для человека это не абстракция. Ферменты — это трёхмерные карманы под конкретную форму субстрата. Зеркальную версию карман либо не берёт вовсе, либо берёт хуже.
Поэтому L-лактат и D-лактат идут по разным маршрутам.
L-лактат обрабатывают привычные L-лактатдегидрогеназы — те самые, что связывают пируват, NADH и NAD+. Это магистраль энергетического обмена. D-лактат для них почти невидим.
У D-лактата свой отдельный фермент. О нём — ниже.
Почему природа вообще держит зеркальные версии под разными ферментами? Потому что стереоспецифичность — это способ навести порядок. Клетка не хочет, чтобы случайная зеркальная молекула вклинивалась в главный энергетический поток. Отдельный узкий фермент под D-форму работает как фильтр: он забирает редкую молекулу, не мешая магистрали.
Пока важно закрепить: «хороший» и «плохой» лактат — плохая модель. Есть две формы, для которых у клетки разные ферментные маршруты. Разница в концентрации, источнике и контексте, а не в моральной окраске молекулы.
2. Где рождается метилглиоксаль: GAPDH, NAD+/NADH и триозофосфаты
Теперь к источнику D-лактата у человека. Он начинается в середине гликолиза.
Гликолиз расщепляет глюкозу до пирувата в цепочке реакций. В середине этой цепочки глюкоза разбивается на два трёхуглеродных осколка — триозофосфаты. Их два: глицеральдегид-3-фосфат и дигидроксиацетонфосфат. Они легко превращаются друг в друга.
Дальше есть узкий, ключевой шаг. Фермент GAPDH (глицеральдегид-3-фосфатдегидрогеназа) окисляет глицеральдегид-3-фосфат. Для этого шага нужен NAD+. Он забирает электроны и превращается в NADH.
И вот тонкое место. Если NAD+ не хватает или GAPDH тормозит, поток на этом шаге застревает. Триозофосфаты накапливаются перед узким горлышком. А чем дольше они стоят, тем выше шанс, что часть из них спонтанно, без всякого фермента, распадётся в метилглиоксаль.
Схема:
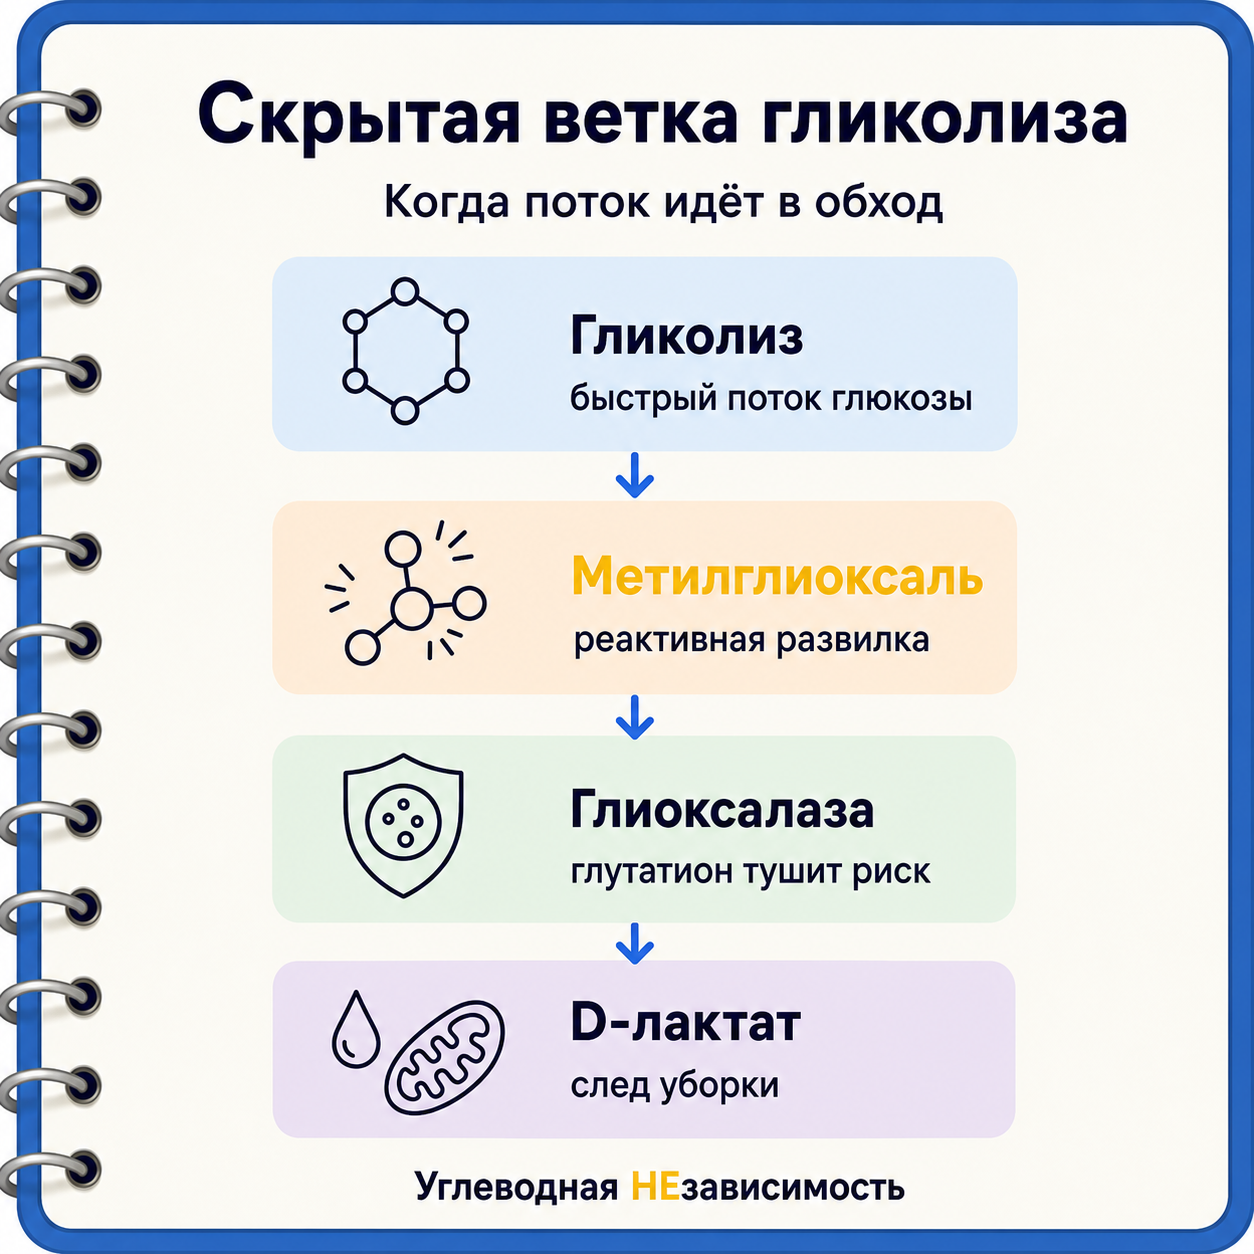
глюкоза → триозофосфаты → (узкое место GAPDH, нужен NAD+) → накопление → метилглиоксаль
Утечка невелика. По оценкам в обзорах, в метилглиоксаль уходит около 0,1–0,4% гликолитического потока. Но метилглиоксаль настолько реактивен, что даже такой ручеёк требует контроля.
Здесь стоит вспомнить прошлую статью. L-лактат нужен как раз для того, чтобы возвращать NAD+ из NADH и не давать гликолизу встать. Когда этот баланс нарушен — NADH много, NAD+ мало, — шаг GAPDH проходит тяжелее. Триозофосфаты стоят в очереди дольше. И тихая утечка в метилглиоксаль растёт. То есть нехватка NAD+ и появление D-лактата — две стороны одного давления.
Что подкручивает эту утечку вверх:
— высокий поток глюкозы через клетку; — торможение GAPDH; — нехватка доступного NAD+; — оксидативный стресс, который повреждает ферменты и защитные системы; — перегрузка митохондрий, когда электронам некуда деться.
Это сильная и логичная биохимическая модель. Важная оговорка: вклад каждого фактора у конкретного человека в рутинной медицине напрямую не измеряют. Мы понимаем направление давления, а не точную цифру.
Есть и второстепенные источники метилглиоксаля. Ацетон при голодании и кетозе может частично идти в метилглиоксаль через фермент CYP2E1. Существует путь через аминоацетон и треонин. Кое-что даёт перекисное окисление липидов. Но у человека в обычных условиях главным источником остаётся гликолиз.
Отдельно подчеркну, потому что тема скользкая. Из «ацетон может быть предшественником метилглиоксаля» не следует «кетогенная диета вызывает D-лактацидоз». Это разные уровни утверждений. Биохимический путь есть; клинически значимого накопления D-лактата у людей на кетодиете это не доказывает.
3. Глиоксалазная система: глутатион, GLO-1, GLO-2 и цинк
Метилглиоксаль нельзя оставить без присмотра. Он реактивнее самой глюкозы и охотно сшивает белки. Поэтому рядом всегда стоит система обезвреживания — глиоксалазная.
Она работает в три такта.
Сначала метилглиоксаль сам, без фермента, связывается с восстановленным глутатионом (GSH) — главным внутриклеточным антиоксидантом. Получается промежуточный аддукт.
Дальше фермент GLO-1 (глиоксалаза-1) переводит этот аддукт в S-D-лактойлглутатион.
Затем GLO-2 (глиоксалаза-2) завершает работу: разрезает молекулу, возвращает глутатион в оборот и выпускает D-лактат.
Схема:
метилглиоксаль + GSH → аддукт → GLO-1 → S-D-лактойлглутатион → GLO-2 → D-лактат + возвращённый GSH
Отсюда сразу видно, почему в теме всплывают глутатион и цинк.
Глутатион — расходник этой уборки. Если его мало, а оксидативный стресс высокий, метилглиоксаль обезвреживается хуже.
GLO-1 — металлозависимый фермент; для человеческого GLO-1 в структуре важен цинк. Это факт про строение фермента.
И ещё одна тонкость. Глутатион — общий ресурс. Его же клетка тратит на защиту от оксидативного стресса. Поэтому когда окислительная нагрузка высокая, на уборку метилглиоксаля глутатиона остаётся меньше. Два стресса — окислительный и карбонильный (от реактивных карбонильных молекул вроде метилглиоксаля) — тянут одно одеяло и усиливают друг друга.
Но здесь легко сорваться в неверный вывод. «Важен цинк» не равно «пейте цинк — и метилглиоксаль уйдёт». «Расходуется глутатион» не равно «купите глутатион в добавке». Это биохимия механизма, а не готовая схема приёма. Дозировки — вне этого текста и без врача не назначаются.
Правильная формула короче:
перегрузка глюкозой + оксидативный стресс + слабая глиоксалазная защита → больше метилглиоксаля → больше гликирования и метаболического шума
4. LDHD: куда уходит D-лактат
D-лактат образовался. Его надо переработать. Для этого у человека есть отдельный фермент — D-лактатдегидрогеназа. Её ген обозначают LDHD.
Это не та лактатдегидрогеназа, о которой обычно думают. Та работает с L-лактатом в цитоплазме. LDHD — другой фермент с другой пропиской.
Что про него известно твёрдо:
— он превращает D-лактат в пируват — обычный пируват, который возвращается в нормальный обмен; — он зависит от FAD. FAD — флавинадениндинуклеотид, кофермент, производное рибофлавина (витамина B2); — он сидит во внутренней мембране митохондрий; — для мышиного LDHD в структурных работах показана зависимость активности от марганца (Mn2+).
Сродство фермента к D-лактату умеренное. В структурной работе на мышином ферменте KM для D-лактата — около 0,122 ммоль/л. KM — это грубо «концентрация, при которой фермент работает вполсилы». Цифра показывает: система настроена на невысокие, следовые уровни D-лактата, а не на потоки.
Здесь важно сразу поставить два флажка честности.
Первый. Марганцевую зависимость и часть кинетики показали на мышином ферменте. Перенос на человека — аккуратный, а не автоматический.
Второй, самый важный для всей темы. FAD в LDHD принимает электроны от D-лактата и становится восстановленным. Но куда эти электроны уходят дальше — какой у фермента физиологический окислитель — у человека пока не установлено. В работе Nature Communications 2023 это сказано прямо: в опытах использовали искусственные акцепторы электронов, а физиологический остался неизвестным.
Запомним этот флажок. Он определит всю третью часть.
Часть 2. Клинические факты
Здесь мы переходим от пробирки и структуры белка к людям. Это наблюдения и случаи, которые описаны в клинике.
5. Диабет и метилглиоксаль-стресс
При диабете 2 типа и его осложнениях у людей описано повышение метилглиоксаля и метилглиоксаль-производных конечных продуктов гликирования (AGEs). Это ассоциировано с сосудистыми и нервными осложнениями.
Механизм логичен. При инсулинорезистентности и высоком сахаре поток через гликолиз становится менее управляемым, оксидативный стресс растёт, а глиоксалазная защита работает хуже. Метилглиоксаль накапливается быстрее, чем система успевает его гасить.
Важна и обратная петля. Метилглиоксаль повреждает в том числе сами гликолитические ферменты. Повреждённый фермент работает хуже — и поток застревает ещё сильнее, а утечка растёт. При хронически высоком сахаре это медленный самоусиливающийся процесс, а не разовое событие.
Но здесь два ограничения, которые нельзя пропускать.
Первое. Повышенный метилглиоксаль-стресс — это не отдельный диагностический тест. Он не заменяет глюкозу, гликированный гемоглобин (HbA1c), инсулин, липиды и оценку органов. Один маркер не ставит диагноз и не описывает осложнения.
Второе. Про сосудистую жёсткость и сшивку коллагена был отдельный разговор, и мы его здесь не повторяем. В этом тексте метилглиоксаль важен иначе — как реактивная развилка между энергетикой и повреждением белков. Одна и та же молекула бывает и сигналом перегрузки, и попыткой клетки притормозить дальнейший гликолиз. В малой дозе это похоже на обратную связь. В хронической перегрузке — на повреждающий цикл.
Практический смысл для читателя. Нормальная глюкоза в один момент — не гарантия низкого метаболического давления. Диабет и инсулинорезистентность — это про поток, запас прочности и утилизацию побочных продуктов, а не только про цифру натощак.
6. GLO-1 и инсулинорезистентность
Есть отдельная линия наблюдений про GLO-1 и чувствительность к инсулину.
В человеческой скелетной мышце и в моделях ожирения и диабета 2 типа описывают снижение эффективности глиоксалазной защиты. Оно связано с нарушением инсулинового сигнала. То есть сахар, инсулин и уборка метилглиоксаля оказываются в одной связке.
Это интересно и важно. Но связка — это пока ассоциация, а не доказанная причинно-следственная кнопка.
Мы не можем сказать «поднимите активность GLO-1 — и инсулинорезистентность уйдёт». У людей это не показано как лечебная схема. Корректная формулировка: нарушение глиоксалазной защиты ассоциировано с инсулинорезистентностью; терапевтический рычаг у людей пока не доказан.
Ставлю это во вторую часть, к клиническим фактам, но с честной пометкой: сам факт ассоциации крепкий, а лечебные выводы — нет.
7. Человеческие случаи дефицита LDHD: подагра и мочевая кислота
Самое прямое доказательство, что LDHD у человека действительно нужен, дала генетика.
Начиная с работ 2019 года описаны люди с редкими мутациями LDHD. У них фермент работает плохо, и D-лактат утилизируется хуже. Это показывает, что путь не декоративный: сломай фермент — и обмен D-лактата меняется.
Дальше — неожиданный поворот. Часть этих случаев связана с гиперурикемией и подагрой: повышенной мочевой кислотой и приступами в суставах, иногда с ранним началом.
Прямая логика связи D-лактата и мочевой кислоты в деталях ещё уточняется. Но сам факт важен: поломка в обмене D-лактата у человека проявляется не «туманом в голове», а вполне телесно — через мочевую кислоту и суставы.
Почему вообще подагра? Обмен D-лактата идёт в митохондриях и завязан на энергетический статус клетки. А обмен пуринов, из которых образуется мочевая кислота, чувствителен к тому же энергетическому балансу и к работе почек. Когда узел утилизации D-лактата ломается, соседние процессы тоже сдвигаются. Детали ещё изучают, но направление — про общий энергетический обмен, а не про «слишком много мяса».
Отсюда практический штрих. Мочевая кислота попадает в список показателей не случайно. Она — ещё один вход в тему энергетического и пуринового обмена, а не только маркер «подагры от мяса».
8. D-лактацидоз: кишечная история, которую не надо отменять
Классическая клиника D-лактата — это кишечник.
Главные зоны риска: короткая кишка, операции кишечного обхода, тяжёлая мальабсорбция углеводов. Иногда сюда добавляют избыточный бактериальный рост (СИБР). Общий механизм один: углеводы массово доходят до бактерий, те ферментируют их и резко поднимают D-лактат.
Симптомы бывают яркими и неврологическими: спутанность, дизартрия, шаткость, сонливость, изменения поведения. Часто — эпизодами после углеводной нагрузки.
И снова та же ловушка тестирования. Обычный анализ «лактат» при этом может быть нормальным, потому что измеряет L-лактат. Нормальный лактатометр не исключает D-лактацидоз в правильном клиническом контексте.
Про пробиотики нужна отдельная аккуратность.
Есть работа 2018 года, где у части пациентов с «туманом в голове», вздутием и газами находили признаки СИБР и косвенные признаки D-лактат-ассоциированных нарушений. В отобранной группе цифры выглядели заметными: СИБР примерно у 68% против 28%, признаки D-лактат-ацидоза — 77% против 25%.
Звучит внушительно, но это надо читать трезво. Это маленькая отобранная группа. «Туман в голове» оценивали субъективно. Вмешательство было смешанным: остановка пробиотиков плюс антибиотики. Отдельные критики прямо указали, что из этой работы нельзя делать вывод «пробиотики вызывают туман в голове».
Поэтому корректная формулировка такая. У отдельных пациентов с кишечными проблемами пробиотики и ферментация могут быть частью картины. Но это не доказательство, что пробиотики вредят мозгу у здоровых людей. Общий вывод из частного случая здесь не тянется.
Кишечник не отменяется. Мы просто расширяем карту: D-лактат — это ещё и эндогенный метилглиоксаль, печень, почки, глиоксалаза и митохондрии.
Часть 3. Гипотезы и модели
Дальше начинается самая красивая и самая скользкая часть. Здесь много логики и мало прямых человеческих доказательств. Всё, что ниже, — модель, а не установленная физиология.
9. D-лактатный обходной путь: что доказано, а что нет
Автор донорского материала предлагает объединяющую идею — «D-лактатный обходной путь» (в оригинале — d-lactate shuttle).
Идея такая. Если клетке не хватает цитозольного NAD+ или комплекс I дыхательной цепи перегружен, часть потока теоретически может идти в обход: через метилглиоксаль в D-лактат, затем через LDHD в пируват. Получается аварийный маршрут, когда обычная магистраль забита.
Логика тут завязана на NAD+. Обычный способ вернуть NAD+ в цитоплазме — превратить пируват в L-лактат. Но если и этот путь, и вход в митохондрию перегружены, теоретически часть углерода может уйти в сторону через метилглиоксаль. Тогда баланс окисления и восстановления кофакторов перераспределяется. Звучит стройно. Но «звучит стройно» и «показано у человека» — разные вещи.
Разложим честно, что здесь доказано, а что достроено логикой.
Доказанные элементы:
— метилглиоксаль превращается в D-лактат через глиоксалазную систему; — LDHD превращает D-лактат в пируват; — LDHD расположен во внутренней мембране митохондрий и зависит от FAD.
Недоказанное:
— единый интегрированный обходной путь как рабочая физиологическая магистраль у человека; — его количественный вклад в энергетику; — обход комплекса I дыхательной цепи именно этим путём в живом организме.
И центральный незакрытый вопрос — тот самый флажок из первой части. Куда LDHD отдаёт электроны у человека, неизвестно. Поэтому:
нельзя утверждать, что человеческий LDHD доказанно передаёт электроны в CoQ10 в живом организме.
Отсюда же аккуратность с цифрой «на 40% меньше АТФ». Логика такая: если электроны входят в дыхательную цепь ниже комплекса I, теоретический выход АТФ ниже, потому что часть насосных шагов пропущена. Но «примерно на 40%» — это расчётная арифметика по биоэнергетике, а не измеренный выход D-лактатного потока у человека. Подавать её как факт измерений нельзя.
Редакционная формула для этой части:
Это не «секретный здоровый путь». Это возможная модель метаболического обхода, которую нельзя превращать в клиническую схему.
Обход не равен оптимальности. Даже если такой маршрут существует, постоянно жить в нём — плохой признак, а не суперсила.
10. Мозг, PARK7/DJ-1 и осторожность про Паркинсон
Почему мозг может быть особенно чувствителен к D-лактату? Здесь есть изящная гипотеза.
Она опирается на распределение ферментов. LDHD сильнее связан с печенью и почками, а в мозге его меньше. Зато в нервной ткани важную роль может играть другой белок — DJ-1 (его ген обозначают PARK7).
DJ-1 умеет работать как глиоксалаза «третьего типа» (её называют GLO-3): он гасит метилглиоксаль без глутатиона. Причём, по экспериментальным данным, DJ-1 склонен переводить метилглиоксаль скорее в L-лактат, чем в D-лактат.
Складывается красивая догадка. Возможно, мозг устроен так, чтобы избегать накопления именно D-лактата, потому что нервная ткань плохо переносит эту форму обхода.
Но дальше — стоп-кран.
DJ-1 связан с болезнью Паркинсона: мутации в PARK7 описаны при наследственных формах. И вот здесь очень легко перепрыгнуть через доказательства. Нельзя писать, что D-лактат вызывает болезнь Паркинсона. Связь DJ-1 с нейродегенерацией и связь DJ-1 с метилглиоксалем — это две реальные линии, но мостик «D-лактат → Паркинсон» не построен.
Корректная формулировка:
DJ-1 связывает тему метилглиоксаля и нейродегенерации на уровне механизма. Но это не доказывает, что D-лактат вызывает болезнь Паркинсона. Детали требуют дополнительных исследований.
Это ровно тот случай, когда красивую гипотезу важно назвать гипотезой, а не выводом.
11. Оксалаты: пробирочная находка, а не диагноз
Одна из самых спорных деталей донорского материала — оксалаты.
В работе 2024 года очищенный человеческий LDHD в пробирке сильно ингибировался оксалатом. Причём эффективно: константа ингибирования Ki — около 0,0012 ммоль/л. Цифра маленькая, и на первый взгляд это выглядит как готовая сенсация: «оксалаты блокируют утилизацию D-лактата».
Здесь нужна максимально холодная голова.
Это находка в пробирке — на очищенном ферменте. Ki 0,0012 ммоль/л — это лабораторный параметр, а не клинический порог и не то, что происходит в живой митохондрии человека. Клиническая значимость у обычных людей пока не показана.
Чего писать нельзя:
— «оксалаты вызывают D-лактатную токсичность»; — «оксалаты вызывают диабет, аутизм или болезнь Паркинсона через блок LDHD»; — и уж тем более нельзя строить на этом самостоятельную «антиоксалатную» схему.
Что писать можно:
Есть биохимический механизм, по которому оксалат в пробирке мешает работе человеческого LDHD. Клиническая значимость у обычных людей требует проверки.
Эта деталь хороша именно как урок границы доказательности. Сильный эффект в пробирке и клинический вывод — разные вещи.
12. Что смотреть практически
Плохой вывод из этой статьи звучал бы так: «срочно искать анализ D-лактата».
Хороший вывод другой: собрать общую картину энергетического обмена.
Что имеет смысл обсуждать с врачом:
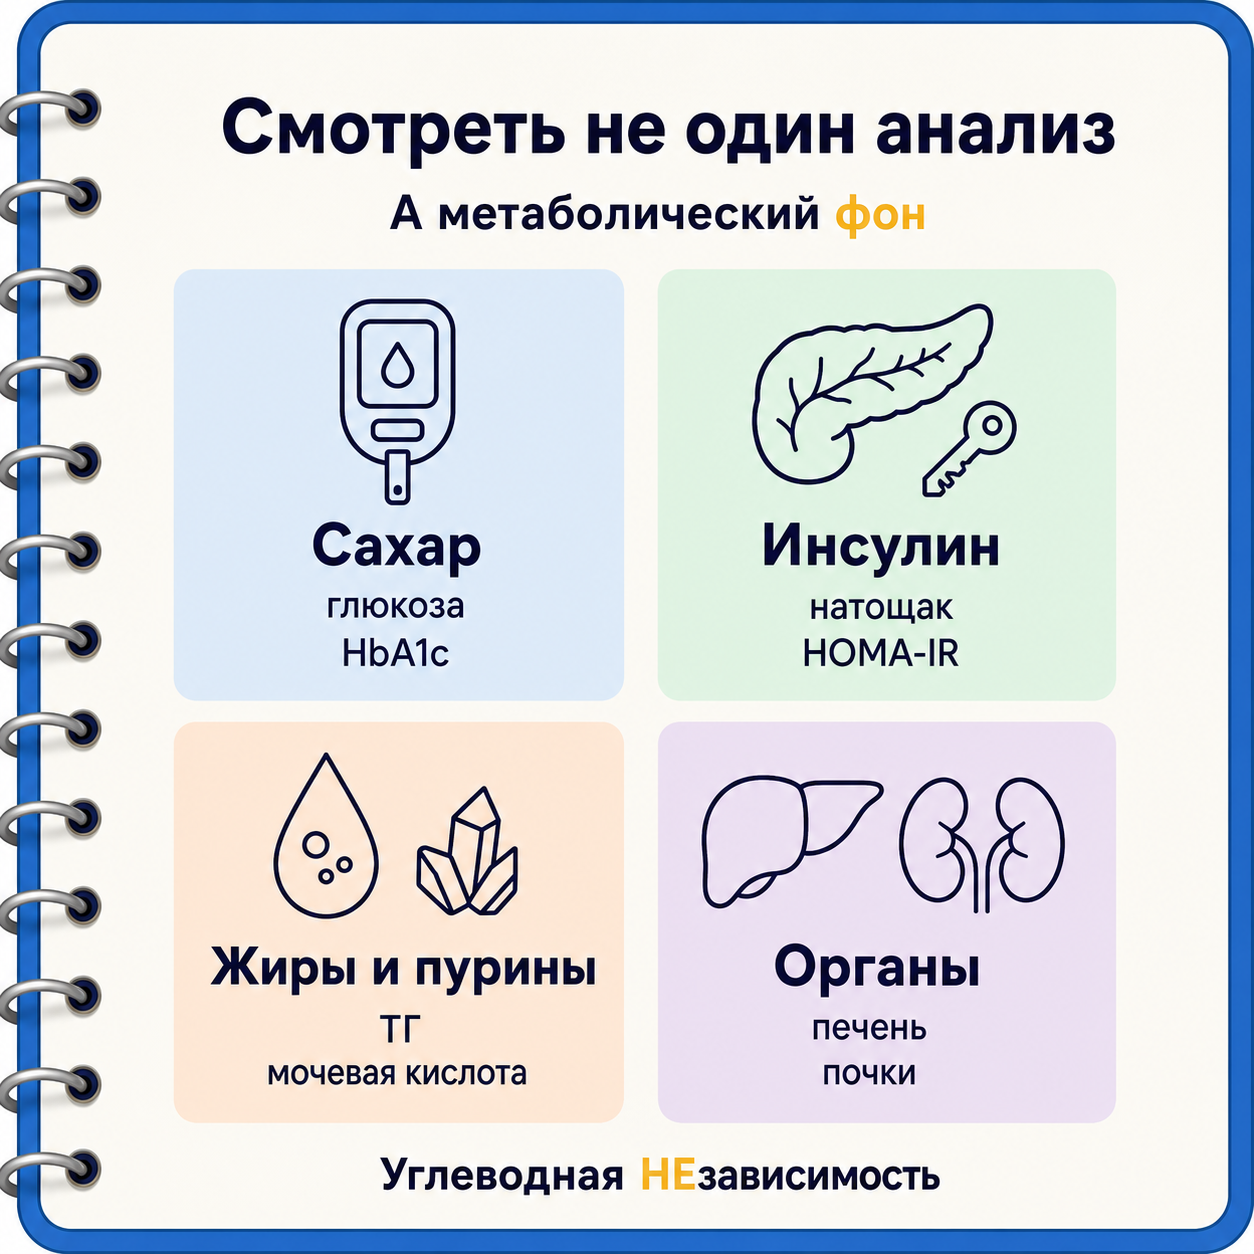
— глюкоза натощак и, по возможности, после еды; — гликированный гемоглобин (HbA1c); — инсулин натощак в мкЕд/мл; — HOMA-IR, индекс инсулинорезистентности: глюкоза натощак (ммоль/л) × инсулин натощак (мкЕд/мл) / 22,5; — триглицериды в ммоль/л; — мочевая кислота; — АЛТ, АСТ, ГГТ — маркеры печени; — креатинин и расчётная скорость клубочковой фильтрации — оценка почек; — электролиты, бикарбонат и анионный интервал — при острых неврологических симптомах и подозрении на ацидоз; — признаки СИБР — при вздутии, отрыжке, нарушениях стула и тумане после еды.
Каждый показатель — про свою грань. Глюкоза и HbA1c — про сам сахар в моменте и в среднем. Инсулин и HOMA-IR — про цену его удержания. Триглицериды — про обмен жиров и печёночную нагрузку. Мочевая кислота — про пуриновый и энергетический обмен и, как мы видели, про LDHD. Печёночные и почечные маркеры — про органы, где путь D-лактата идёт активнее всего.
Отдельно про нутриентные узкие места. Рибофлавин, цинк, марганец, глутатионовая система, CoQ10 — всё это фигурирует в механизме. Но фигурировать в механизме и быть готовой схемой приёма — разные вещи. Никаких самостоятельных дозировок. Антибиотики, бикарбонат, инфузии, диализ, резкое ограничение углеводов, назначение или отмена пробиотиков «от D-лактата» — это тем более решения врача, а не вывод из статьи.
И повторю прямо, потому что это главная практическая ошибка. Домашний и рутинный лактатометр обычно измеряет L-лактат, а не D-лактат. Нормальный результат такого прибора ничего не говорит о D-лактате.
Числовые ориентиры для памяти:
— обычный L-лактат в крови: примерно 0,5–2,2 ммоль/л; — обычный D-лактат в плазме: около 0,010 ммоль/л, в отдельных лабораторных диапазонах до ~0,025 ммоль/л; — D-лактацидоз: обычно D-лактат от 3,0 ммоль/л плюс метаболический ацидоз — почти в 300 раз выше обычного уровня; — для сравнения, L-лактацидоз чаще обсуждают при L-лактате выше 4–5 ммоль/л вместе с ацидемией.
13. Где проходят границы доказательности
Соберём тему в одну честную рамку по уровням уверенности.
Твёрдая биохимия. Метилглиоксаль образуется в обмене веществ, в основном из триозофосфатов гликолиза. Глиоксалазная система через глутатион, GLO-1 и GLO-2 переводит его в D-лактат. У человека есть фермент утилизации D-лактата — LDHD, зависимый от FAD и сидящий во внутренней мембране митохондрий.
Клинические факты. D-лактацидоз реален и связан прежде всего с короткой кишкой и мальабсорбцией. Описаны человеческие случаи дефицита LDHD, часть — с гиперурикемией и подагрой. При диабете 2 типа выше метилглиоксаль-стресс и его продукты гликирования.
Гипотезы и модели. «D-лактатный обходной путь» как регулятор NAD+, кислотности и перегрузки комплекса I. Передача электронов LDHD в CoQ10. Цифра «40% меньше АТФ». Особая защита мозга через DJ-1. Клиническая роль оксалатов. Всё это — модели и догадки, а не установленная человеческая физиология.
Ценность подробного разбора не в том, чтобы продать гипотезу как диагноз. А в том, чтобы честно показать, где кончается измеренное и начинается предполагаемое.
Что унести с собой
D-лактат — не новый враг и не новая модная причина всех симптомов.
Это редкое окно в скрытую часть обмена: как клетка справляется с быстрым гликолизом, метилглиоксалем, нехваткой NAD+, оксидативным стрессом и перегрузкой митохондрий.
Если система работает, D-лактат почти не виден. Он тихо рождается при уборке метилглиоксаля и так же тихо утилизируется.
Если система перегружена, он напоминает: проблема не только в сахаре крови. Проблема в том, как клетка перерабатывает поток энергии и насколько хорошо гасит побочные реактивные продукты.
И держите в голове три уровня. Твёрдая биохимия. Клинические факты. Гипотезы. Их полезно не путать — тогда карта остаётся рабочей, а не превращается в самодиагноз.
Метаболическое здоровье — это не отсутствие обходных путей.
Это способность не жить в них постоянно.
Берегите себя и будьте здоровы!
Основные источники
- Levitt MD, Levitt DG. Quantitative Evaluation of D-Lactate Pathophysiology. Clin Exp Gastroenterol. 2020. PMID: 32982363.
- Kang KP, et al. D-Lactic Acidosis in Humans: Review of Update. 2006. PMCID: PMC3894545.
- Uribarri J, et al. D-lactic acidosis. Medicine (Baltimore). 1998. PMID: 9556700. doi:10.1097/00005792-199803000-00001.
- Ewaschuk JB, et al. D-lactate in human and ruminant metabolism. J Nutr. 2005. PMID: 15987839.
- Phillips SA, Thornalley PJ. The formation of methylglyoxal from triose phosphates. Eur J Biochem. 1993. PMID: 8444148. doi:10.1111/j.1432-1033.1993.tb17638.x.
- Allaman I, et al. Methylglyoxal, the dark side of glycolysis. Front Neurosci. 2015. PMCID: PMC4321437.
- Maessen DE, et al. The role of methylglyoxal and the glyoxalase system in diabetes and other age-related diseases. Clin Sci. 2015. PMID: 25818485. doi:10.1042/CS20140683.
- Schalkwijk CG, Stehouwer CDA. Methylglyoxal… in Diabetes. Physiol Rev. 2020. PMID: 31539311. doi:10.1152/physrev.00001.2019.
- Monroe GR, et al. Identification of human D lactate dehydrogenase deficiency. Nat Commun. 2019. PMID: 30931947.
- Drabkin M, et al. Hyperuricemia and gout caused by missense mutation in D-lactate dehydrogenase. J Clin Invest. 2019. PMID: 31638601.
- Jin S, et al. Lactate dehydrogenase D is a general dehydrogenase for D-2-hydroxyacids…. Nat Commun. 2023. PMID: 37863926. doi:10.1038/s41467-023-42456-3.
- Stefan E, et al. The catalytic action of human D-lactate dehydrogenase is severely inhibited by oxalate…. Arch Biochem Biophys. 2024. PMID: 38373542. doi:10.1016/j.abb.2024.109932.
- de Bari L, et al. D-Lactate transport and metabolism in rat liver mitochondria. Biochem J. 2002. PMID: 11955284. PMCID: PMC1222695.
- Lee JY, et al. Human DJ-1 and its homologs are novel glyoxalases. Hum Mol Genet. 2012. PMID: 22523093. doi:10.1093/hmg/dds155.
- Reichard GA, et al. Plasma Acetone Metabolism in the Fasting Human. J Clin Invest. 1979. PMID: 438326. PMCID: PMC371996.
- Rao SSC, et al. Brain fogginess, gas and bloating…. Clin Transl Gastroenterol. 2018. PMID: 29915215. — и критический комментарий Quigley EMM, et al. 2018. PMCID: PMC6155354.